小さな遺伝子が発生の大きな分岐を制御
わずか76個のアミノ酸からなるペプチドをコードする遺伝子が、コイが精巣と卵巣のどちらを発達させるかを決定し得ることが、Science Advancesに掲載された研究で明らかになった。panguと名付けられたこの遺伝子は、Y染色体上の1,487塩基対の領域に位置する。機能を失わせると、遺伝的に雄のコイは卵巣を発達させた。一方、遺伝的に雌のコイに導入すると、精巣を発達させた。
目次
この発見により、淡水魚の大きく広範に分布するグループであるコイ科で、実験的に機能が検証された初の性決定マスター遺伝子が確立された。最も強い証拠は黄河コイを用いた実験から得られ、緋鯉と錦鯉でも追加の機能検証が行われた。ただし、コイ科のすべての種が同じ遺伝子を使うことを示したものではない。
上海海洋大学の胡偉教授が、中国科学院水生生物研究所などの機関との共同研究を主導した。研究は10年以上にわたる調査を経て行われた。研究チームは、天と地を分けたとされる中国神話の天地創造神、盤古にちなんで遺伝子を命名した。雄性発生を始動させる役割を反映した名称だという。
論文「コイにおける雄性運命を統御するヘリックス・ループ・ヘリックス遺伝子」は、Science Advancesの研究論文として第12巻第41号に掲載された。学術誌の書誌情報では掲載日は2026年10月9日とされる一方、発表では北京時間の10月10日に掲載されたと説明されている。この日付の違いは時差によるものとみられる。
なぜスイッチの発見は難しかったのか
コイはXX/XY型の遺伝的性決定システムを持ち、通常、雌はX染色体を2本、雄はX染色体とY染色体を1本ずつ持つ。しかし、この染色体構成が分かっていても、発達中の生殖器を卵巣ではなく精巣へ導く遺伝子は特定されていなかった。
今回の研究以前に公表されていたコイのゲノム配列は、論文によるとXX型の雌のものだった。そのため研究者は、調べる必要のあるY染色体配列を含む雄の参照ゲノムを持っていなかった。反復するDNA配列や、コイのゲノムが重複していることも探索を難しくしていた。
コイは異質四倍体で、交雑を通じて一体化した祖先由来の2組の染色体セット(AとB)をゲノムに持つ。論文によると、これら祖先系統は約2,300万年前に分岐し、約1,240万年前に融合した。遺伝子やDNA領域の類似したコピーがあると、雄に特有の配列を特定する作業が複雑になる。
魚類の他のグループでは、すでに性決定遺伝子が知られていたため、この空白は際立っていた。論文の序論は、約20科にわたるおよそ140種の硬骨魚類で、少なくとも28種類の異なる遺伝子が報告されていると述べている。panguはコイ科の知見に欠けていた部分を補うものであり、魚類全般に通じる普遍的な法則を示すものではない。
101匹の魚からY染色体の小さな挿入配列へ
研究チームはまず、黄河コイの雄のゲノムを構築した。ゲノムは50本の染色体配列にわたり、DNA塩基は計16億7,000万個に及んだ。続いて、雌親と、その子にあたる雄50匹、雌50匹の計101匹を対象に、ゲノムを再解読した。
雄と雌でDNA断片の存在量を比較した結果、当初、雄に特有の候補断片が428個見つかった。研究者はそのうち有力な2つを選び、さらに検証した。確認された断片の1つは847塩基対で、染色体B25の末端近くにある、より大きな挿入配列の内部に位置していた。
クローニングと配列解読により、この大きな領域には雄に特有の1,487塩基対が含まれることが分かった。DNAの網羅度を調べる独立した解析でも、同じ染色体領域が示された。地理的に離れた複数のコイ集団を対象にした検査でも、この配列と雄との関連が裏付けられた。
染色体のイメージングも確認材料となった。この配列を標的とするプローブはXY型とYY型の雄でシグナルを示したが、XX型の雌では示さなかった。YY型の魚ではXY型の魚の2倍のシグナルが見られ、配列がY染色体上にあることと一致した。こうした検査で候補配列の位置は確かめられたものの、機能を示すにはさらなる実験が必要だった。
精巣の形成に先立ち活性化するpangu
研究チームはY染色体の挿入領域に、447塩基の転写産物を作り、231塩基のコード配列を持つ遺伝子を特定した。この配列は76個のアミノ酸からなるPanguペプチドをコードする。主要なタンパク質データベースで検索したところ、既に注釈された遺伝子との有意な類似性は見つからなかった。
Panguはヘリックス・ループ・ヘリックス(HLH)ドメインを持つ。この構造的特徴は、遺伝子活性の調節に関わる他のタンパク質との相互作用を助ける場合がある。解析では、この種のタンパク質の一部でDNAへの直接結合に関わる、隣接する塩基性領域の強い証拠は見つからなかった。この違いは、Panguが下流の標的をどう制御するのかを考える上で重要だ。
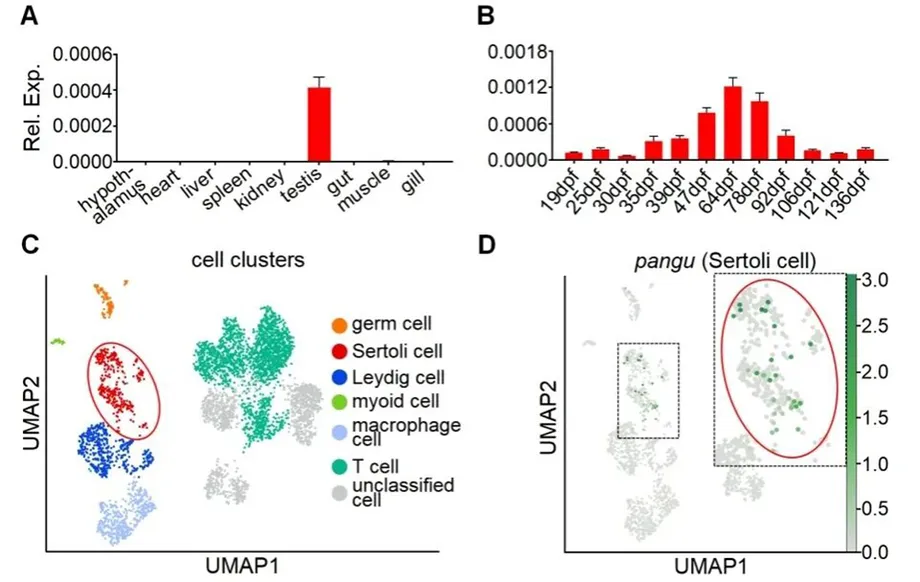
遺伝子の働く時期も、性発生を導く役割と整合していた。受精後19日から転写産物が検出された。これは、目に見える性分化が始まると報告されている受精後35日より前だった。発現量は受精後64日にピークに達し、92日以降は低下した。
個々の細胞を解析したところ、セルトリ細胞と推定される細胞群の一部で最も強い発現が見られた。セルトリ細胞は精巣の発達を支える細胞で、最終的に精子を作る生殖細胞とは異なる。組織イメージングでも、セルトリ細胞に関連した発現が裏付けられた。他の既知の調節因子はより遅い時期に発現のピークを迎えており、panguが発生過程の初期に働くことと一致している。
遺伝子の除去と導入で発生が逆転
決定的な実験では、提唱されたスイッチの働きを両方向から検証した。研究者はCRISPR編集を用いて、XY型のコイでpanguを機能しない状態にした。受精後35日から発達中の生殖腺に卵巣腔が形成され、卵巣へ向かう発生パターンを示した。最終的には卵巣ができ、卵の発達を示す証拠も確認された。
変化は組織の見た目だけにとどまらなかった。雌性分化遺伝子foxl2の活性は高まり、雄性分化遺伝子amhとdmrt1の活性は低下した。タンパク質の測定結果も同じ傾向を示した。テストステロンと11-ケトテストステロンの濃度が下がり、エストラジオールが上昇して、雌に似たホルモン構成となった。
別の実験では、YY型のコイでpanguの機能するコピーを1つ残した。この魚は正常な雄の生殖腺発達を保った。検証した条件下では、機能するコピーが1つ残っていれば雄性発生経路を維持できるという結果を裏付けている。
逆方向の実験では、研究チームがpanguとその周辺配列を含むDNA構築物をXX型の魚に導入した。遺伝的には雌であるコイが精巣を発達させ、精子形成の証拠や、遺伝子・タンパク質・ホルモン発現の雄性パターンを示した。panguの機能を失ったXY型の変異体でも、導入によって精巣の発達が回復した。
一連の実験から、検証したコイではpanguが雄の性決定に必要かつ十分であることが示された。機能を失わせると発生は卵巣へ向かい、導入すると精巣へ向かわせることができる。ただし、染色体そのものがXXからXY、あるいはその逆に変わるわけではなく、発生の帰結が変化する。
卵巣への経路を遮断すると作用の仕組みが見える
研究では、cyp19a1aがPanguの初期の下流標的として特定された。この遺伝子は、エストロゲンの産生に関わる酵素である卵巣アロマターゼをコードする。その活性は卵巣への分化を支えるため、雄性を促す初期シグナルが発生を方向転換させる経路として有力だ。
cyp19a1aの活性の違いは、受精後19日の時点ですでに見られた。panguの機能を失わせたXY型の魚では発現が上昇し、導入した遺伝子を持つXX型の魚では低下した。性分化に関わる他の複数の遺伝子では、これに相当する早期の変化は見られなかった。
ヒト由来の実験用細胞と、錦鯉のひれから樹立された細胞株を用いた実験では、Panguはcyp19a1aの2つのコピーの調節領域の活性を抑えた。HLHドメインが完全な形で保たれていない変異型Panguはその能力を失った。この結果は、ペプチドの構造と調節作用との関連を示している。
最も強い検証は魚そのものを使って行われた。XY型のpangu変異体でcyp19a1aを機能しない状態にすると、雄性のスイッチとされた遺伝子が失われているにもかかわらず、精巣の発達が回復した。この遺伝学的な救済実験により、cyp19a1aがpanguの下流に位置することが示された。すなわち、卵巣への経路を遮断すれば、上流シグナルの欠如を迂回できる。証拠は、Panguが少なくとも一部はcyp19a1aを抑制して雄性発生を促す仕組みを支持するが、関与する分子過程のすべてが解明されたわけではない。
黄河コイ以外にも発見は当てはまるのか
研究者は、コイの主要な2亜種群の代表種の雄でpanguを検出した。対象には東アジア群の黄河コイ、緋鯉、錦鯉と、ヨーロッパ群のドイツ鏡鯉が含まれた。また、同属の別種であるCyprinus acutidorsalisでも、雄に特有の配列を特定した。
緋鯉と錦鯉では、さらに機能検証を行った。panguを除去、または導入すると、黄河コイと同じく反対方向の性転換が起きた。これらの実験は、DNA配列を検出するだけの場合よりも、共通の機能があることを強く裏付ける。
ただし、結果の適用範囲は慎重に捉える必要がある。論文はコイ属に保存された雄性スイッチを報告している一方、双方向の性転換を詳細に検証したのは黄河コイ、緋鯉、錦鯉だ。ドイツ鏡鯉とCyprinus acutidorsalisでの検出は遺伝学的な証拠を広げるが、同じ機能実験が行われたことを意味しない。
同様に、コイ科で初めて検証された性決定マスター遺伝子であることは、Panguがコイ科全体の性を決めるという意味ではない。この発見は、近縁魚のうちどの種が同じスイッチを持ち、どの種が異なる仕組みを使うのかを調べる出発点となる。
2009年のマーカーは先行する手掛かりであり、マスター遺伝子の証明ではない
2009年にMolecular and Cellular Probes誌に掲載されたマーカー研究では、すでに雄のコイに特有のDNA断片が見つかっていた。研究者はランダムプライマー220種類を調べ、プライマーS2107が雄で909塩基対の断片を増幅することを発見した。
このパターンは、3つのコイ系統から集めた30匹で確認された。追加の増幅試験とハイブリダイゼーション試験でも、雄との関連が裏付けられた。この断片はゼブラフィッシュの反復配列との類似性が低く、ソウギョではハイブリダイゼーションのシグナルは検出されなかった。
この研究は、黄河コイの遺伝的性を判別するツールとして配列を提案した。しかしマーカーは、雄の発生を引き起こさなくても性染色体とともに受け継がれることがある。今回の研究は、発現する遺伝子を特定し、その機能を除去または導入すると生殖腺の発達が変わることを示した点で一歩進んでいる。ここで示された証拠からは、909塩基対のマーカーと今回新たに定義された1,487塩基対の領域が同じ配列だとは確認できない。
研究の節目は年単位で離れている一方、掲載日は異なるタイムゾーンでの同じ発表を示している。
- 2009年10月:先行研究が、雄のコイに関連する909塩基対のDNAマーカーを報告。
- 2026年10月9日:Science Advancesが、pangu研究論文を第12巻第41号に掲載。
- 2026年10月10日(北京時間):発表では、新たな知見の掲載日をこの日としている。
- 2026年10月11日:一般向けの発表で、発見と10年以上にわたる調査が紹介された。
未解明の点
Panguが発生で果たす役割の証拠は、その正確な分子作用についての説明よりも強固だ。研究はcyp19a1a活性の抑制と、両遺伝子を結び付ける遺伝学的な救済を示している。しかし、Panguが関連する調節DNAに直接結合するのか、他のタンパク質を介して働くのかは、まだ明らかになっていない。
著者らは、panguを発現する細胞についても課題を挙げている。発現が弱く限られているのは、発生中のセルトリ細胞系譜に属する、まれな細胞集団または一時的な細胞集団で活動しているためかもしれない。そうした細胞が初期の前駆細胞段階に当たるかを解明すれば、小さな始動シグナルがどのように精巣形成につながるのかを説明する手掛かりになる。
上海海洋大学の博士研究員、陳匡新氏と中国科学院水生生物研究所の副研究員、陳吉氏が共同筆頭著者を務めた。責任著者は胡偉氏、朱作言氏、浙江万里学院の葛楚天氏、オタワ大学のVance L. Trudeau氏。中国科学院院士の何順平氏ら専門家が指導と支援を行った。
次の実験の予定は示されていない。中心的な結論は、染色体上の位置特定、早期発現、双方向の機能検証によってすでに裏付けられている。今後の課題は、Panguがその役割を果たす仕組みと、検証したコイのグループを超えてどこまで共有されるのかを明らかにすることだ。
要点
- Panguは、コイ科で初めて実験的に機能が検証された性決定マスター遺伝子。
- コイのY染色体にある1,487塩基対領域内で、76個のアミノ酸からなるペプチドをコードする。
- panguの機能を失わせるとXY型のコイは卵巣を発達させ、XX型のコイに導入すると精巣を発達させた。
- 卵巣への経路に関わる遺伝子cyp19a1aを機能しない状態にすると、pangu変異体で精巣の発達が回復した。
- 緋鯉と錦鯉での機能検証は共通の役割を支持するが、コイ科全体で普遍的な仕組みだとは示していない。
- Panguがcyp19a1aを抑制する正確な分子経路は未解明。